Ozillator sinir dinamikasındakı dəyişikliklər əks etdirir, lakin yuxu mərhələləri və yuxu təzyiqindəki dəyişikliklər arasındakı keçidləri mütləq müəyyənləşdirə bilməz. Burada göstəririk ki, yuxu nəzarət edən nöronlar Drosophila (dFBNs) -ın gövdəli fan şəklində bədənini innervat edir və yuxu ilə əlaqəli yavaş dalğa aktivliyi (SWA) yaradırlar. dFBN ansamblında membran gərginliyi hiperpolarizasiya olunmuş aşağı və depolarizasiya olunmuş yuxarı vəziyyətlər arasında asılı olan bistable hüceyrələr var. Ossilasyonlar iki yarım mərkəzin inhisferik glutamaterji sinapslar ilə bağlı olan yarım yarım yarım kürə mübarizəsinə əsaslanır. DFBN-nin glutamat buraxılışı ilə məhdudlaşdırılmış müdaxiləsi SWA və başlanğıc xəttini pozur və yuxu geri qaytarır, SWA-nın optogenetik təkrarlanması isə yuxu doğurur. dFBNs yuxu uyanıq dövründə SWA-ni yaradır (dofaminergik nevronları uyandırmaqla qarşılıqlı ziddiyyətə baxmayaraq) və yuxu tarixindən asılı olaraq yuxu ehtiyacını artırmaqla yuxu gücünü tənzimləyir. Ozillator format yuxu təzyiqinin davamlı kodlaşdırılmasına imkan verir, lakin amplitud modullaşdırılmış siqnalı ikitərəfli yuxu uyanıq vəziyyətlərinə çevirən mexanizmlər tələb edir.
Bütün geri bildirim nəzarətçilərininki kimi yuxunun homeostatik tənzimlənməsinə məsuliyyət daşıyan nevronların dinamikası nəzarət olunan obyektin dinamikası ilə birləşir: bir sistemin çıxışları digərinə giriş kimi xidmət edir. Drosophila-da aparılan tədqiqatlar yuxu yaradan nevronların yuxu və oyanqadan bədənin fiziologiyasında dəyişiklikləri necə hiss etdiklərini ətraflı şəkildə təsvir etməyə başlayıb. Yuxu nəzarət edən nevronlar1,2, ventilator şəklində bədənin sırt qatlarına proqnozlaşdırılan (dFBN) öz mitoxondriyaları vasitəsilə elektronların axını izləyərək yuxu təzyiqinə baxırlar3,4. Yuxu itkisi elektronların təchizatı və ATP tələbatı arasında bir tarazlıq yaradır4 ki, elektronları nəfəs zəncirindən molekulyar O2 ilə nəzarətsiz yan reaksiyalara çevirir, bu da reaktiv oksigen növlərini yaradır3, membran lipidlərinin çox doymamış yağlı acil (PUFA) zəncirlərini qısa və ya orta zəncirli karbonillərə parçalayır5. dFBN-lər PUFA-dan olan karbonillərin buraxılışını hesablayır (və bu siqnalı yuxuya çevirir) və bu prosesdə təzyiqlə bağlı kalium kanalı arasında alosterik dialoq əhatə edir.
Bu anlayışlar digərləri təcrübələrdə təcrid etmək üçün bəzi dəyişənləri sıxmış təcrübələrdə əldə edilmişdir. Məsələn, yuxu tarixinin2 və ya mitokondriyal dinamikasının4 dFBN-lərin mövcud freqensiyası funksiyasını necə dəyişdirdiyini müəyyən etmək üçün nöronlar sabit axın nümunələri ilə idarə edildi; hüceyrə redoks kimyası3, lipid peroksidasiya məhsullarının5 və ya dopaminin6 stimullaşdırmasının xüsusi ion kanallarını necə moduladığını həll etmək üçün dFBN-lərin membran potensialı sabit gərginliklər arasında addımlanmışdır. DFBN populyasiyası yuxu təzyiqindəki dəyişikliklərə necə cavab verir və bu reaksiyaların orqanizmin yuxu əzək vəziyyətini necə dəyişdirdiyi, buna görə də bilinmir.
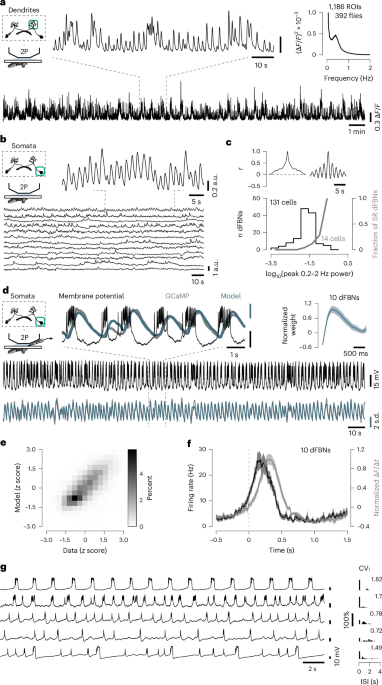
DFBN ansamblının aktivliyini in vivo-da pozulmadan təsvir etmək üçün, R23E10-GAL4-ün nəzarəti altında genetik olaraq kodlanmış Ca2+ sensor GCaMP6f (QCaMP qısaca) ifadə edən sinəklər (Methods; Extended Data Fig. 1a, b) və dFBN-lərin dendritiq tuftlarını iki foton mikroskopı vasitəsilə təsvir edilmişdir. Dendritik fluorescensiya, 0.21 Hz-də ritmik olaraq təkrarlanan Ca2+ keçidli görünüşləri göstərdi (Şəkil. 1a və əlavə video 1). Səkimilərdə nomenklatura analoji olaraq0,22 Hz tezlik bantında fəaliyyətə yavaş dalğa fəaliyyəti (SWA) kimi müraciət edirik.
Məlumat dəstində GCaMP- nin keçid hallarının müntəzəmliyi Fig. 1a-da bütün dFBN populyasiyasının sinxron dərəzləmələrdə iştirak etməsi və ya rütmik hüceyrələrin bir alt dəstinin dendriti fluoresans üzərində üstünlük təşkil etməsi sualını ortaya qoyur. Bu, görüntülən bölgədə bütün dFBN proseslərinin çəkilmiş töhfələrini təmsil edir. Bu imkanları ayırd etmək üçün eyni yarımkürədə 8 hüceyrə orqanizminin (məsələn: 312) medianından eyni vaxtda GCaMP siqnallarını qeydə alırdıq (Şəkil. 1b və əlavə video 2) və son dərəcə korreli olmayan somatik fluoresansın zaman seriyalarının (Pearson r = 0,05 ± 0,15, ortalama ± s.d) olduğunu tapdı. Müxtəlif dFBN-lər 0,22 Hz bantında dəyişən güc miqdarlarını cəmləşdirir və bu da çox saxtakar bir paylanmaya səbəb olur (Şəkil. 1c, logaritmik miqyasda qeyd edin). Bu kontinuumun yuxarı ucunda, nöronlar var ki, onlar dendritlərdəkilərə bənzəyir (Şəkil. 1b, c və genişləndirilmiş məlumatlar Fig. 1 cg). Buna görə də bir neçə nöron dendritik birləşmə siqnalının çoxunun fərqini izah edə bilər (artı R2 = 0,66, aralıq: 0,460,81; Genişləndirilmiş məlumat rəqəm. 1cg), bu da axonal fluoresansla sıx əlaqələndirilir (Məhdudlaşdırılmış məlumatlar Fig. 1 saat.
Yavaş oscilə edən dFBN-lərdə GCaMP keçidinin əsasında olan elektrik hadisələrini xarakterizə etmək üçün biz eyni zamanda bütün hüceyrə çirkli və iki foton Ca2+ təsvir təcrübələri in vivo həyata keçirdik. Figurda gərginlik və GCaMP izlərinin üst-üstə qoyulması. 1d Ca2+ keçidlərin yüksək tezlikdə hərəkət potensialına səbəb olan böyük, davamlı depolarizasiyalarla üst-üstə düşdüyünü göstərir. Bu UP dövlətləri bir qədər daha uzun orta müddətli aşağı dövlətlərlə mübadilələşdi və dövrdə nöronlar hiperpolarizasiya olundu və atəşkəsdən imtina etdi. Kvantitativ analiz üçün biz bu qeydlərdən GCaMP impuls cavabını təxmin etdik və onu fəaliyyət potensialının qeydindən fluoresans siqnallarını proqnozlaşdırmaq üçün uğurla istifadə etdik (Şəkil. 1d, e); GCaMP keçid dövrünün başlaması ilə uyğunlaşdırılmış bir zirvə tezliyi histogramı maksimum fluoresans dəyişikliyinə qədər ~ 120 ms- a çatdı (Şəkil. 1f).
Xülasə — davamını mənbədə oxuyun.


